代謝による細胞死制御
代謝が運命を左右するー細胞にとっての死活問題
多細胞生物にとって、細胞内エネルギーバランスの維持は極めて重要な課題といえます。利用可能な代謝基質の供給量と生体要求量は絶えず変動しています。そして、個体レベルでの健常性を保つために、状況に応じて一部の細胞は能動的に死滅する必要があります。この自己犠牲的な細胞死のプログラムは「アポトーシス」として知られています。アポトーシスは多様な因子によって制御されますが、エネルギー恒常性の維持において中核をなす重要因子が、ミトコンドリア・AMPK/mTORC1・アセチルCoA・小胞体(ER:Endoplasmic reticulum)です。
プロテインテックの特集:ミトコンドリアマーカー・小胞体ストレス
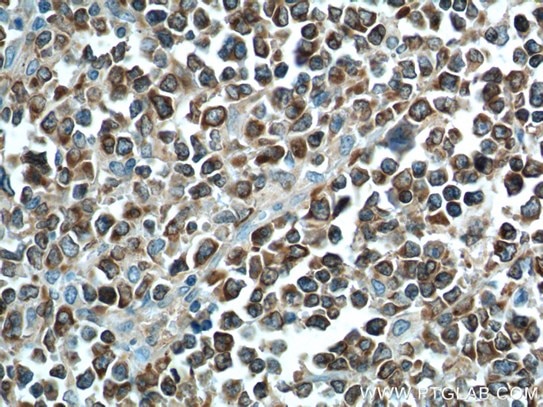
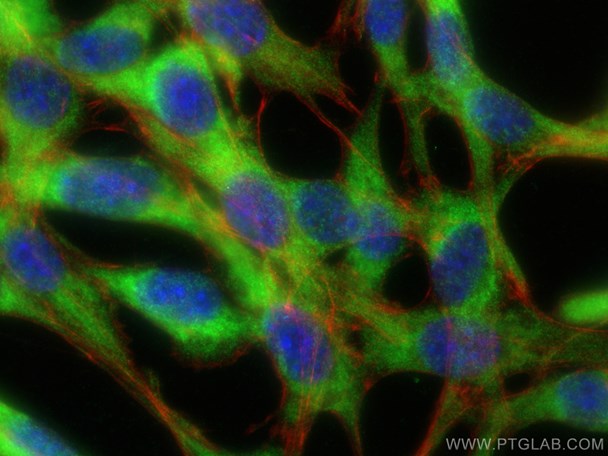
ミトコンドリアはATP産生の場として細胞内の発電所の役割を担うだけでなく、多様な細胞機能制御に関与しています。ミトコンドリア膜の透過性は、アポトーシスの代謝的制御において極めて重要な役割を果たします。ミトコンドリア外膜の透過性が亢進するとシトクロムcが漏出し、シトクロムcは細胞質に存在するApaf-1と複合体(アポトソーム)を形成し、それに伴いカスパーゼが活性化されてアポトーシスが誘導されます。この現象は、酸化ストレスに加え、タンパク質の生合成速度や他の代謝調節因子の活性に敏感に応答するBcl-2ファミリーに属するタンパク質(図1・図2)によって代謝的に制御されています1。アポトーシスや細胞生存シグナルの制御に関わることから、Bcl-2の変異や発現異常はオートファジープロセスの異常やリンパ腫をはじめとするがんに関与することが示唆されています2, 4。
プロテインテックの関連ブログ:ゲスト寄稿 | ミトコンドリアは単なる細胞のエネルギー発電所ではありません
 |
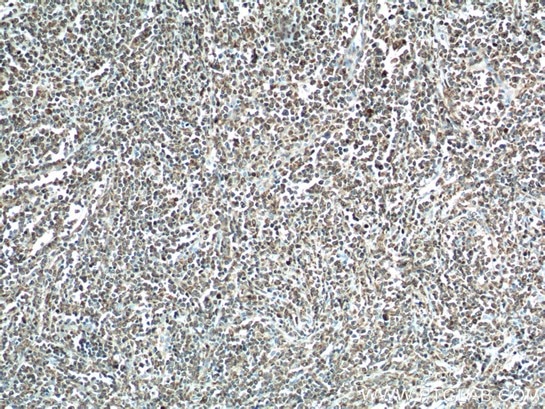 |
| 図1-1. ヒトBCL2抗体(カタログ番号:12789-1-AP、希釈倍率1:200)を使用したパラフィン包埋ヒトリンパ腫組織スライドの免疫組織化学染色(×40)。Tris-EDTAバッファー(pH 9.0)で熱処理し抗原賦活化した試料を使用。 | 図1-2. ヒトBCL2抗体(カタログ番号:12789-1-AP、希釈倍率1:200)を使用したパラフィン包埋ヒトリンパ腫組織スライドの免疫組織化学染色(×10)。Tris-EDTAバッファー(pH 9.0)で熱処理し抗原賦活化した試料を使用。 |
代謝バランス調節の重要な制御因子であるAMPKとmTORC1は、連動してアポトーシスも制御します。グルコース欠乏等によって解糖系の反応速度が低下してAMP/ATP比が高くなると、AMPKはmTORC1の構成因子や上流因子をリン酸化してその活性を抑制することで、翻訳速度を低下させてタンパク質合成を阻害しアポトーシスを促進します1。興味深いことに、視床下部に存在するニューロンの細胞内エネルギーの状態は満腹感に影響を与えます3。
代謝調節において重要な役割を担うもう1つの分子として、細胞呼吸の過程で産生・消費されるアセチルCoAが挙げられます。例えば卵母細胞では、活発な代謝によりアセチルCoAの消費量が増加して遊離CoAが蓄積するとCaMKIIが活性化され、カスパーゼ-2の活性化が抑制されて細胞死が阻止されることが示されています。
こうした制御機構に加え、小胞体(ER)も細胞死の代謝制御において極めて重要な役割を担います。細胞が必要とする多様な膜タンパク質・分泌タンパク質を小胞体で正常に産生・プロセシングするにはアミノ酸・糖・酸素の供給が不可欠です。これらの原料が欠乏すると、小胞体やゴルジ体によるタンパク質プロセシング過程が遅滞して不良タンパク質が蓄積し、小胞体ストレス応答が活性化します。小胞体ストレス応答の過程で、PERKはeIF2αをリン酸化し全体的な翻訳速度を低下させる一方で、アポトーシス促進性転写因子の発現を促すことで細胞の運命を細胞死の方向へ誘導します。通常はタンパク質の翻訳速度が低下すれば、小胞体やゴルジ体を介したフォールディングや糖鎖修飾等のタンパク質プロセシングの遅滞は改善され、一連の機能を適切な状態に維持できます。しかし、翻訳過程を抑制しても下流の処理能力が追い付かない場合は、アポトーシス促進型Bcl-2ファミリータンパク質が活性化され、ミトコンドリアを介したアポトーシスが始動します1。
 |
 |
|
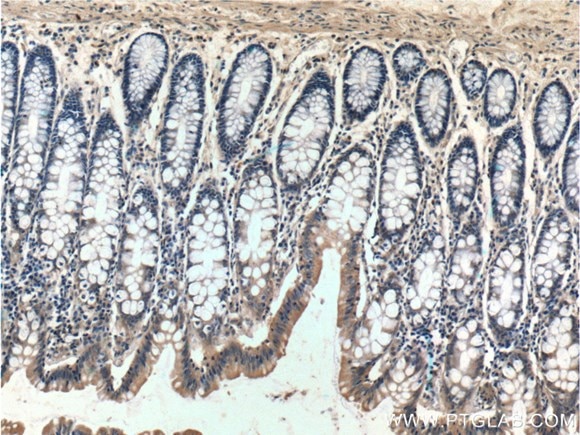
| 図2-1. BCL2L1(Bcl-xL)抗体(カタログ番号:10783-1-AP、希釈倍率1:400)+CoraLite®488標識AffiniPure Goat Anti-Rabbit IgG(H+L)抗体(カタログ番号:SA00013-2)を使用したNIH/3T3細胞(-20 ℃ EtOH固定)の免疫蛍光染色解析像。緑:Bcl-xL、赤:F-actin(CoraLite®594標識Phalloidin)。 | 図2-2. BCL2L1(Bcl-xL)抗体(カタログ番号:10783-1-AP、希釈倍率1:200)を使用したパラフィン包埋ヒト結腸組織スライドの免疫組織化学染色(×10)。 |
小胞体ストレスは糖尿病の病態形成においても特に重要な役割を担っています5。また、がんでは上述した代謝に関与する因子の多くに変異が認められます。アポトーシスに至る多くの代謝経路が存在するにもかかわらず、がんはそれらの経路すべてを回避する機構を獲得しています。アポトーシスを誘導する制御因子を再活性化する手段を解明することが、がんに対する新規治療法の開発につながると考えられます。